RNA-Seq解析では、ある条件で高発現し、別の条件で低発現するような発現変動遺伝子(DEG)を探すことが一般的です。しかし、こうした典型的な発現パターンを示す遺伝子が、必ずしも生物学的な現象の原因に関わる遺伝子とは限りません。
例えば、疾患の発症に複数の遺伝子が関与している場合、原因遺伝子であっても、健常群と疾患群で単純な発現差を示さない可能性があります。以下では、単純化した10種類の生物学的モデルを使って、原因遺伝子がどのような発現パターンを示すのかを考えてみます。
1因子のモデル
モデル1:Single Factor Model
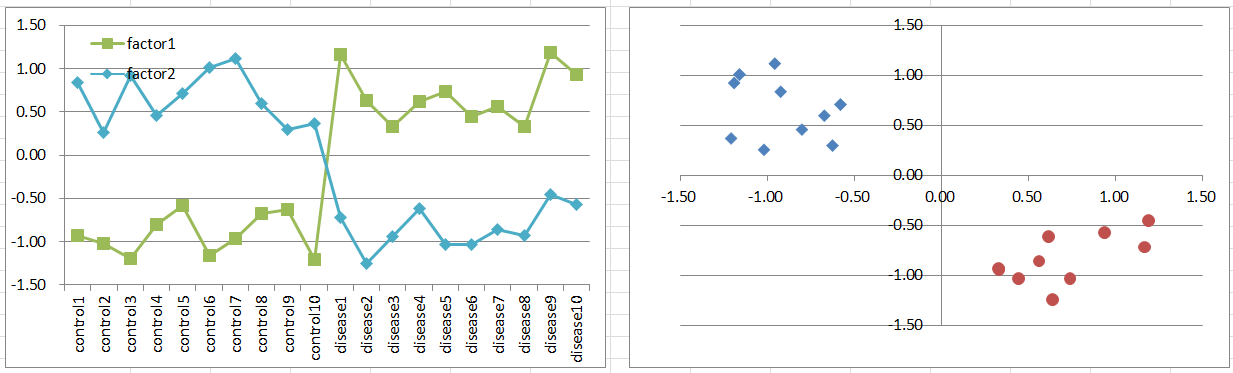
一つの原因遺伝子の発現量が高い、あるいは低いときに発症するモデルです。
この場合、健常群と疾患群は、その遺伝子の発現量によって一次元的に分離されます。典型的なDEGとして検出されることが期待できる、最も単純なモデルです。
しかし、複雑な疾患の発症が、常に一つの遺伝子の発現量だけで決まるとは考えにくいでしょう。
2因子のモデル
モデル2:Two Factors Model
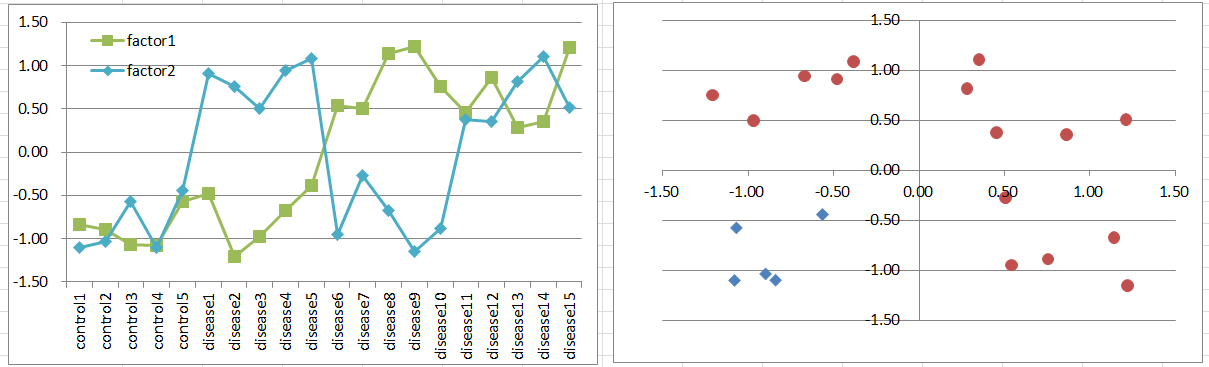
二つの原因遺伝子があり、どちらか一方でも高発現していれば発症するモデルです。二つの遺伝子はホモログかもしれませんし、同じ生物学的な機能を実現する異なる経路に関わっているのかもしれません。
各遺伝子の高発現・低発現の組み合わせが同じ頻度で現れると仮定すると、健常群と疾患群の比率は1:3となります。二つの遺伝子を軸に取った散布図では、健常群が一つの象限に、疾患群が残りの三つの象限に分布します。
このとき、個々の原因遺伝子の発現量は疾患群内で二峰性の分布を示す可能性があります。そのため、通常のT検定が仮定する群内の正規性が満たされない場合があります。それでも、群間の平均発現量に差が生じるため、小さなP値を示す可能性があります。
ここで注目したいのは、統計モデルの前提が満たされなくても、T検定の計算結果を探索の手がかりとして利用できる場合があるということです。ただし、そのP値を通常の有意差検定と同じように解釈できるとは限りません。
モデル3:Co-factors Model
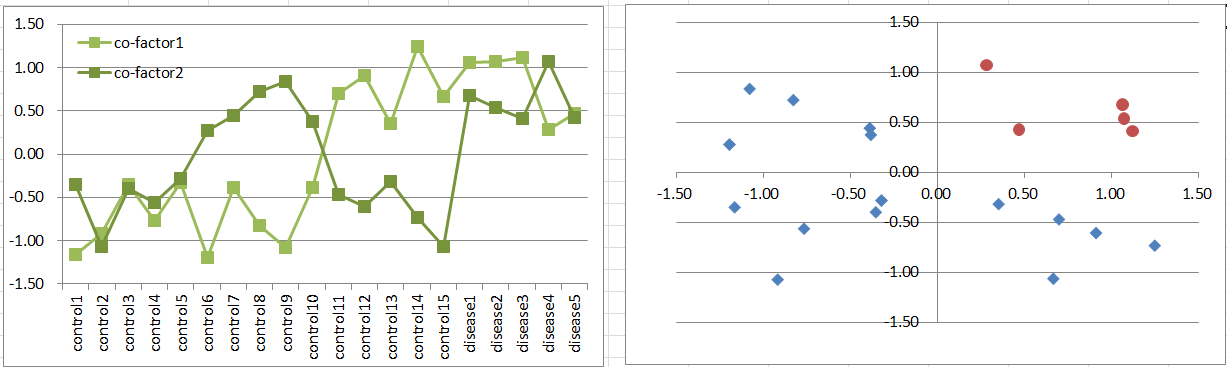
二つの原因遺伝子があり、その両方が高発現しているときにだけ発症するモデルです。二つの因子が協調して働くという、生物学的に十分考えられる仕組みです。
各組み合わせが同じ頻度で現れると仮定すると、健常群と疾患群の比率は3:1となります。散布図では、疾患群は一つの象限に、健常群は残りの三つの象限に分布します。
モデル2とは発症条件が異なりますが、個々の原因遺伝子に注目すると、群間の発現差や群内のばらつきに似た特徴が現れる可能性があります。
モデル4:Factor + Inhibitor Model
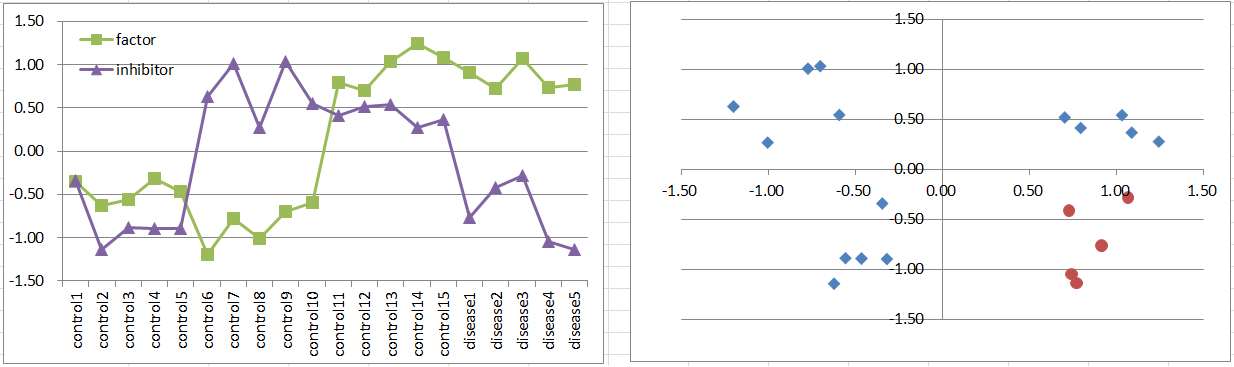
一つの原因遺伝子が高発現すると発症しますが、抑制遺伝子も同時に高発現している場合には発症しないモデルです。
各組み合わせが同じ頻度で現れる場合、疾患群は一つの象限に分布します。これはモデル3と同じ割合です。
モデル3では二つの因子が協調して発症しますが、モデル4では原因因子と抑制因子の組み合わせによって発症が決まります。異なる生物学的メカニズムでも、似た発現パターンが生じることが分かります。
モデル5:Two Balancers Model
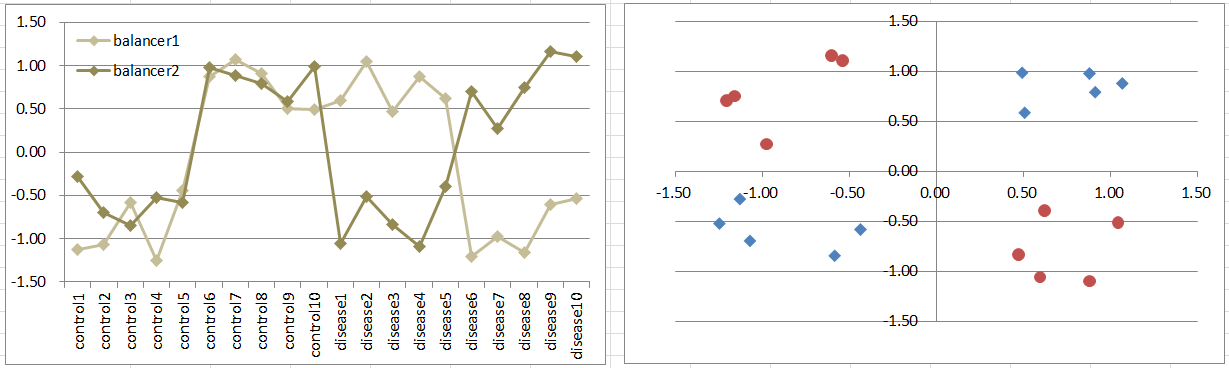
二つの遺伝子の発現量のバランスが崩れたときに発症するモデルです。
例えば、あるパスウェイに拮抗する二つの入力シグナルがあり、そのバランスが保たれているときには正常に機能するとします。しかし、片方の発現量がもう片方に対して相対的に高くなると、正常な状態が維持できなくなるというものです。
このモデルでは、健常群と疾患群がそれぞれ対角に位置する二つの象限に分布します。
個々の遺伝子の平均発現量が健常群と疾患群でほとんど変わらなくても、二つの遺伝子の発現量の関係によって疾患の有無が決まる可能性があります。そのため、個別の遺伝子に対するT検定では、このメカニズムを捉えにくいと考えられます。
それでも、シミュレーションでは偶然に小さなP値が得られる場合があります。したがって、P値が小さいことだけを根拠に、その遺伝子が原因に関わっていると判断することもできません。
モデル2~5から分かるのは、原因となるメカニズムが異なっていても、個々の遺伝子の発現パターンには似た特徴が現れる場合があるということです。次は因子の数を三つに増やしてみます。
3因子のモデル
モデル6:Two Factors + Inhibitor Model
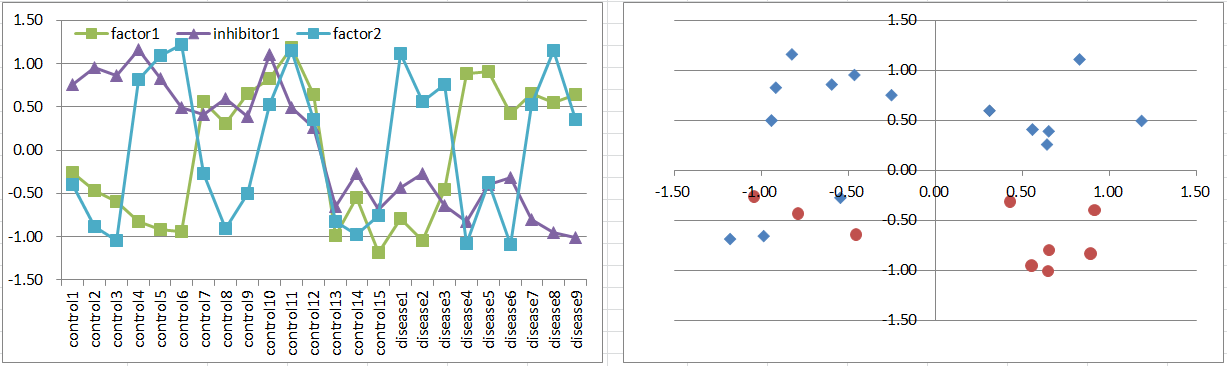
二つの原因遺伝子のどちらか一方が高発現すると発症しますが、抑制遺伝子が同時に高発現している場合には発症しないモデルです。
各因子の高発現・低発現の組み合わせが同じ頻度で現れると仮定すると、疾患群は三次元空間の八つの領域(オクタント)のうち三つに分布します。
因子が一つ増えただけですが、個々の原因遺伝子の発現パターンはさらに複雑になります。原因遺伝子の発現差は小さくなり得る一方、抑制遺伝子の方が明瞭な群間差を示すことも考えられます。
モデル7:Factor + Co-inhibitors Model
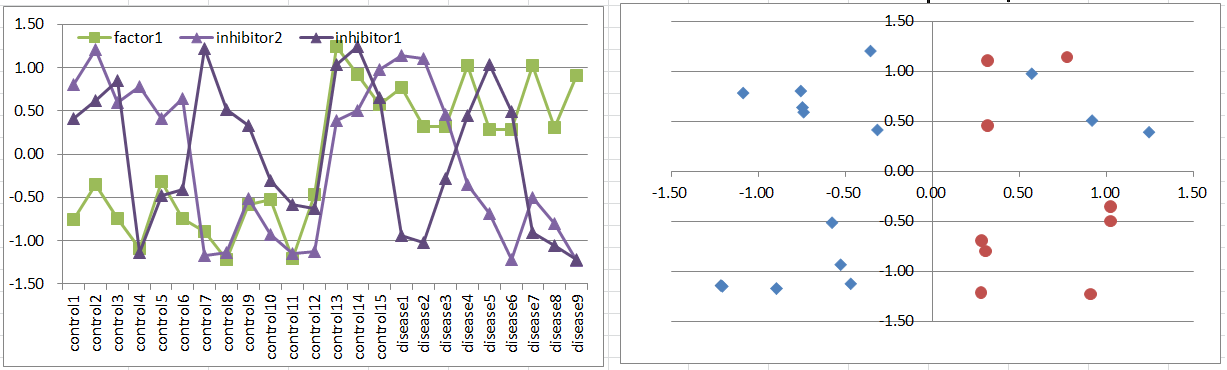
一つの原因遺伝子が高発現すると発症しますが、二つの抑制遺伝子が両方とも高発現している場合にだけ発症が抑制されるモデルです。
この場合も、疾患群は三次元空間の八つの領域のうち三つに分布します。モデル6とは原因因子と抑制因子の関係が異なりますが、発現パターンには似た特徴が現れます。
モデル8:Co-factors + Inhibitor Model
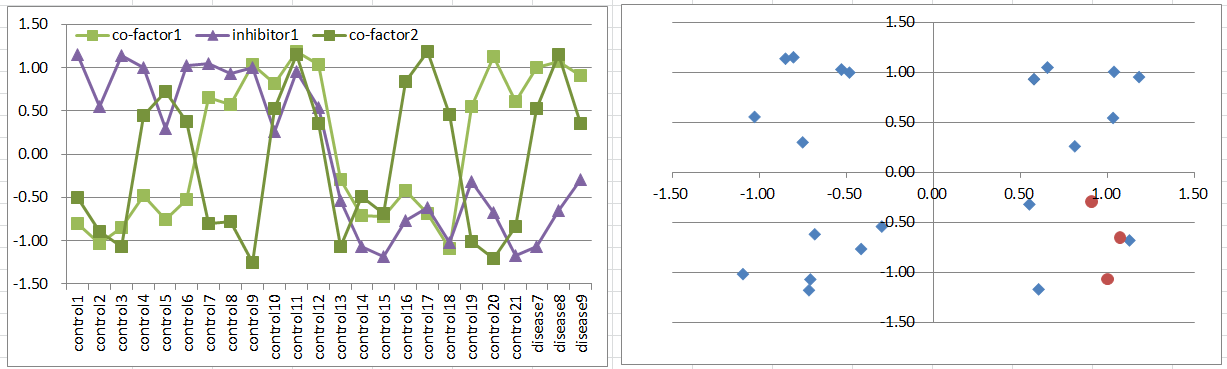
二つの原因遺伝子が両方とも高発現しているときに発症しますが、一つの抑制遺伝子が高発現していれば発症を抑制できるモデルです。
各組み合わせが同じ頻度で現れると仮定すると、疾患群は三次元空間の八つの領域のうち一つにだけ分布します。
モデル6やモデル7と比較すると、発症する条件がさらに限定されます。ただし、実際の疾患の頻度が低くなるかどうかは、各因子の状態がどの程度の頻度で現れるかにも依存します。
モデル9:Factor + Two Inhibitors Model
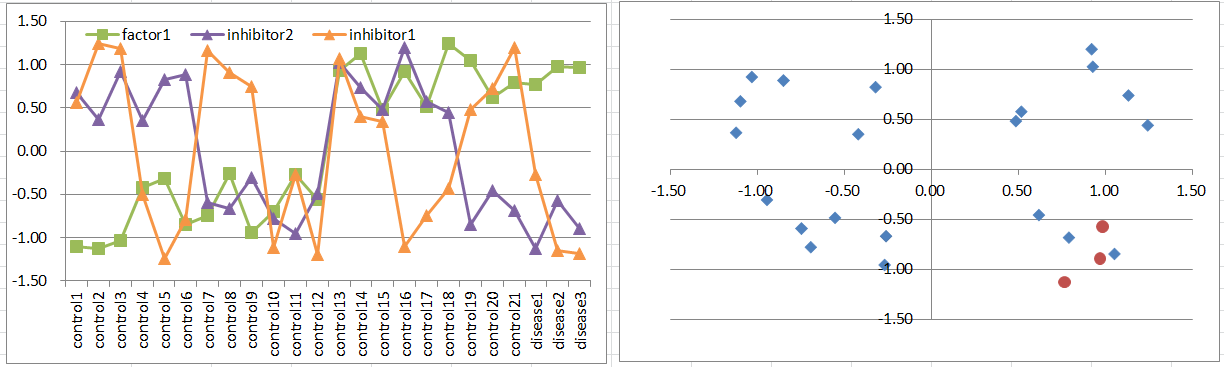
一つの原因遺伝子が高発現すると発症しますが、二つの抑制遺伝子のいずれかが高発現していれば、発症が抑制されるモデルです。
この場合、疾患が起こるのは、原因遺伝子が高発現し、かつ二つの抑制遺伝子がどちらも低発現しているときだけです。疾患群は三次元空間の八つの領域のうち一つに分布し、モデル8と似たパターンになります。
モデル10:Three Balancers Model
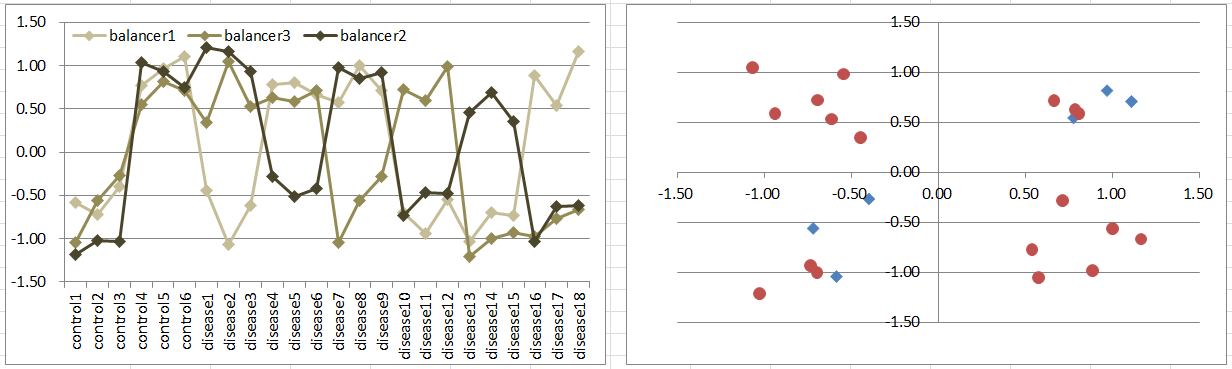
最後に、三つの遺伝子の発現量のバランスによって発症が決まるモデルを考えてみましょう。
これらの遺伝子の発現量が釣り合っているときには正常ですが、一つの遺伝子の発現量が他の二つと大きく異なる場合には発症すると仮定します。
モデル5を三つの因子に拡張したもので、健常群は三次元空間の対角に位置する二つの領域に分布します。
このモデルでも、個々の遺伝子の発現量だけではなく、遺伝子間の発現バランスに注目する必要があります。
Conclusion
DEG解析では、偽陽性を制御しながら、統計的に有意な発現差を持つ遺伝子を選び出そうとします。しかし、統計的に有意な発現差を持つ遺伝子を集めることと、生物学的な仮説に合う遺伝子を集めることは、必ずしも同じではありません。今回の単純化したモデルでも、原因遺伝子が典型的なDEGの発現パターンを示さない例が多く見られます。
そこで、シンプルなT検定を別の目的に利用することが考えられます。例えば、P値が極めて小さい遺伝子を優先するのではなく、有意判定の閾値付近(例えばP値0.05~0.15程度)の遺伝子を積極的に集め、クラスタリングによって特徴的な発現パターンを探すという方法です。これは、統計的に有意な遺伝子を集めるためではなく、生物学的な仮説に合う遺伝子の割合を候補集団の中で高めようとする試みです。
ただし、原因となるメカニズムは異なっていても、モデル3と4、6と7、8と9、5と10では、それぞれ似た発現パターンが現れます。つまり、観察される発現パターンの種類は、その背後にある発病メカニズムの種類よりも少ない可能性があります。したがって、観察された発現パターンから、その背後にあるメカニズムを短絡的に決めつけることはできません。それでも、こうして得られたクラスターについて、原因因子、抑制因子(inhibitor)、補助因子(co-factor)のような役割を仮定し、それらの組み合わせから考えられるメカニズムを探っていくというのは、試す価値のあるアプローチではないでしょうか。